

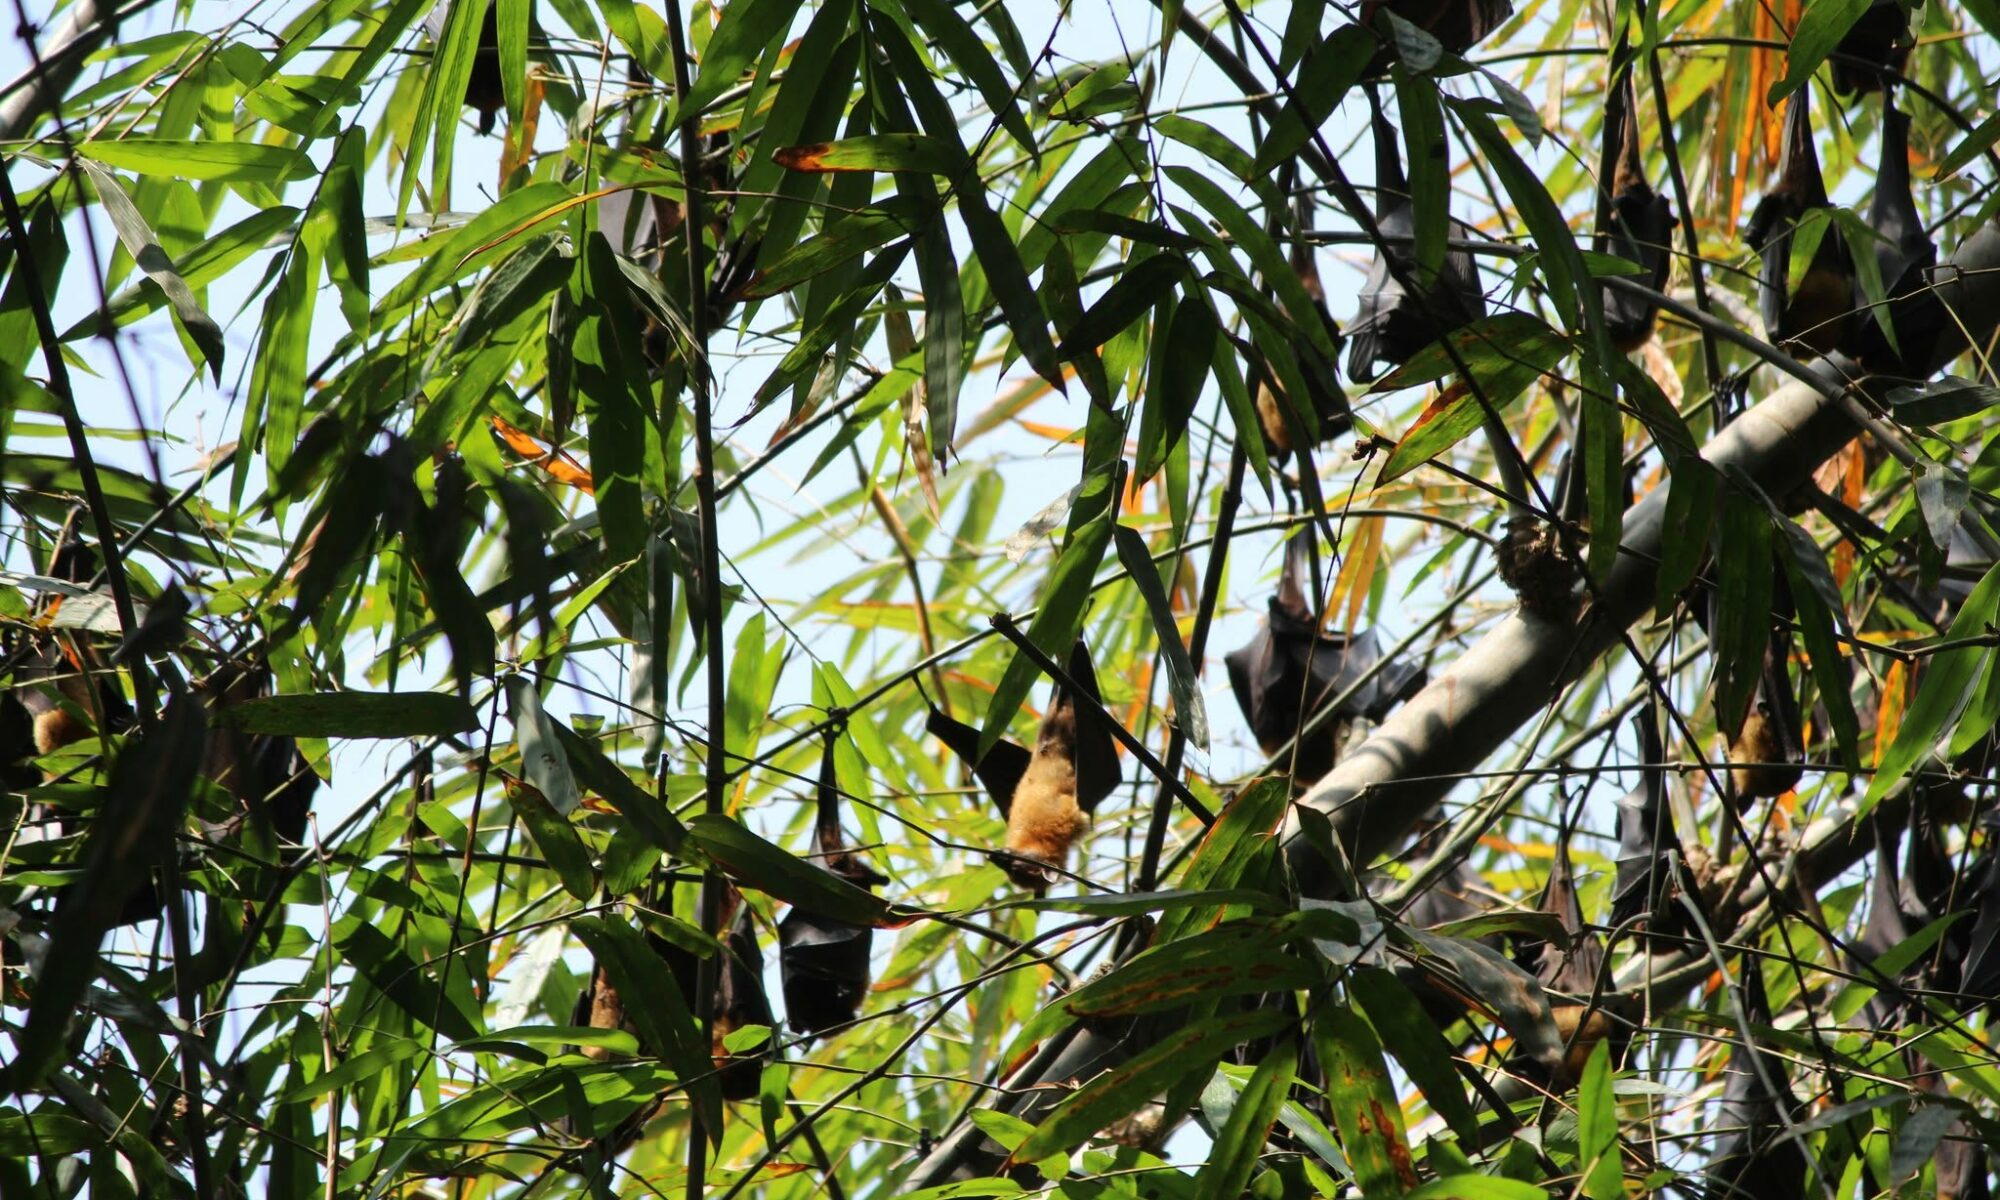
Zapada noc. W podszycie lasu Ameryki Południowej nietoperz z rodzaju Carollia poszukuje dojrzewających owoców roślin z rodzaju Piper. W Afryce rudawka palmowa wyrusza z dziennej kolonii i pokonuje dziesiątki kilometrów w poszukiwaniu kwiatów i owocujących drzew. W Australii rudawki przelatują nad lasami, parkami i przedmieściami. Dzielą je oceany, łączy nocne poszukiwanie pokarmu.
Owocożerne nietoperze zamieszkują przede wszystkim tropikalne i subtropikalne rejony świata. Odżywianie się owocami rozwinęło się niezależnie w dwóch wielkich liniach ewolucyjnych.
W Afryce, południowej i południowo-wschodniej Azji, Australii oraz na wyspach Oceanu Indyjskiego i Pacyfiku żyją rudawkowate (Pteropodidae). Należą do nich niewielkie gatunki ukrywające się wśród liści oraz duże rudawki z rodzaju Pteropus, których rozpiętość skrzydeł może przekraczać metr. W Ameryce Środkowej i Południowej owoce stanowią podstawę pokarmu wielu gatunków liścionosowatych (Phyllostomidae). Owocożerność rudawkowatych Starego Świata i liścionosowatych Nowego Świata powstała niezależnie (Hodgkison i in. 2013).
W Europie nie występuje bogata społeczność owocożernych nietoperzy znana z tropików. Rudawka nilowa (Rousettus aegyptiacus) żyje jednak na Cyprze oraz we wschodniej części regionu śródziemnomorskiego. Historia jej występowania i ochrony na Cyprze została opisana przez Spitzenberger (2006).
Nocny lot do spiżarni
Owoce nie uciekają, ale znalezienie dojrzałego owocu w gęstej koronie drzewa wymaga wielu umiejętności. Nietoperz musi dotrzeć do właściwego miejsca, odróżnić dojrzały owoc od niedojrzałego, wylądować na gałęzi, a następnie zjeść zdobycz albo przenieść ją w spokojniejsze miejsce.
Owocożerne nietoperze korzystają z pamięci przestrzennej. Zapamiętują położenie drzew i wracają do nich podczas kolejnych nocy. Badania rudawki nilowej w Izraelu wskazują, że nietoperze dobrze znają własne obszary żerowania i położenie drzew pokarmowych. Pamięć przestrzenna pozwala im korzystać ze znanych zasobów bez konieczności podążania za innymi osobnikami (Lourie i in. 2024).
Pamięć oszczędza czas i energię. Nietoperz nie musi każdej nocy przeszukiwać całego krajobrazu od początku. Może lecieć znaną trasą i sprawdzać drzewa, które wcześniej zapewniały pokarm.
Kiedy owoce pojawiają się nieregularnie i są rozproszone na dużym obszarze, potrzebna staje się mobilność. Telemetria satelitarna wykazała, że australijskie rudawki Pteropus poliocephalus często zmieniają miejsca pobytu i przemieszczają się na duże odległości. Pozwala im to korzystać z zasobów pojawiających się w różnych częściach krajobrazu (Roberts i in. 2012).
Długie nocne podróże odbywa również afrykańska rudawka palmowa (Eidolon helvum). Badania prowadzone w Ghanie wykazały, że w zależności od pory roku nietoperze docierały na żerowiska oddalone od dziennej kolonii o kilka, kilkadziesiąt, a czasem prawie 88 kilometrów. Autorzy oszacowali, że nasiona mogą być przenoszone od kilkuset metrów do kilkudziesięciu kilometrów od rośliny macierzystej (Fahr i in. 2015).
Najpierw zapach
Dojrzały owoc wysyła w noc chemiczną wiadomość. Jego zapach informuje, że miąższ dojrzał i warto poświęcić energię na przylot.
Zarówno rudawkowate, jak i owocożerne liścionosowate mają dobrze rozwinięty węch. Zapach pomaga im odnaleźć owocującą roślinę, ocenić dojrzałość owoców, a następnie wybrać konkretny okaz. Owoce zjadane przez nietoperze często wytwarzają wyraźną woń. Może ona przekazywać więcej informacji o ich dojrzałości niż sama barwa (Hodgkison i in. 2013).
Eksperymenty z dwoma niewielkimi gatunkami liścionosowatych – Artibeus watsoni i Vampyressa pusilla – pokazały, że zapach odgrywa ważną rolę w rozpoznawaniu dojrzałych fig. Nietoperze korzystały również z echolokacji, która pomagała im odnaleźć owoc i kontrolować podejście do rośliny (Korine i Kalko 2005).
Podobne doświadczenia przeprowadzono z Carollia castanea, nietoperzem związanym z owocami roślin z rodzaju Piper. Ich wyniki wskazują, że zapach pomaga wykrywać owoce, a echolokacja dostarcza dodatkowych informacji o ich położeniu. Nietoperz łączy informacje odbierane nosem i uszami, zamiast polegać tylko na jednym zmyśle (Leiser-Miller 2020).
Jeszcze dokładniej przyjrzano się temu u owocowca jamajskiego (Artibeus jamaicensis). W doświadczeniu przeprowadzonym w klatce lotowej nietoperze miały odnaleźć pachnącą bananem nagrodę umieszczoną na jednej z kilku platform. Nie podążały bezpośrednio wzdłuż smugi zapachowej. Zwalniały i kolejno sprawdzały kilka możliwych miejsc, przelatując bardzo blisko platform. Łączyły informacje zapachowe z echolokacją i pamięcią przestrzenną. Autorzy nazwali tę technikę próbkowaniem seryjnym (Brokaw i in. 2021).
Oczy czy echo?
Większość rudawkowatych odnajduje pokarm głównie za pomocą węchu i wzroku. Ich duże oczy wykorzystują słabe światło nocnego nieba. Wzrok pozwala rozpoznawać sylwetki drzew, luki między koronami i układ gałęzi.
Rudawka nilowa ma jeszcze jedną możliwość. Wytwarza sygnały echolokacyjne za pomocą szybkich ruchów języka. Krótkie kliknięcia pomagają jej orientować się w ciemnych jaskiniach, lądować i oceniać położenie przeszkód (Yovel i in. 2011). Rudawki potrafią również bardzo szybko zmieniać kierunek wiązki dźwięku. Badania połączone z modelowaniem wskazują, że ważną rolę odgrywa w tym zmiana położenia języka (Lee i in. 2017).
Owocożerne liścionosowate z Ameryki korzystają z echolokacji krtaniowej. Ich krótkie sygnały sprawdzają się podczas lotu wśród gęstej roślinności. Echo odbite od owocu może mieszać się z echami liści i gałęzi.
Doświadczenia Kalko i Condon (1998) pokazały, że Phyllostomus hastatus odnajdywał za pomocą echolokacji owoce Gurania spinulosa wystawione na zwisających, pozbawionych liści pędach. Owoce umieszczone wśród liści na poziomych gałęziach były znacznie trudniejsze do wykrycia. Sposób, w jaki roślina prezentuje owoce, może więc ułatwiać nietoperzom odnalezienie pokarmu.
Chwycić i odlecieć
Po dotarciu do owocującej rośliny nietoperz może zastosować kilka technik. Duże rudawki często lądują bezpośrednio na gałęzi. Zawisają na tylnych kończynach, przyciągają owoc do pyska i odgryzają kawałki miąższu.
Mniejsze gatunki mogą wykonać krótki zawis przed rośliną, a następnie wylądować na niej lub porwać owoc. Zachowanie Cynopterus sphinx obserwowano podczas doświadczeń prowadzonych w niewoli. Nietoperze kilkakrotnie zbliżały się do pokarmu, a ostatnie podejście kończyły zawisem i lądowaniem. Częściej odwiedzały dojrzałe i rozdrobnione banany niż ich sztuczne imitacje. Wyniki wskazywały, że zapach miał większe znaczenie niż sam kształt owocu (Shafie i in. 2014).
Wiele owocożernych liścionosowatych nie zjada owocu na roślinie. Nietoperze z rodzaju Carollia zrywają owoce roślin z rodzaju Piper i przenoszą je w pysku do nocnego miejsca odpoczynku. Dopiero tam rozpoczynają posiłek. Pod regularnie wykorzystywaną gałęzią można później znaleźć nasiona oraz fragmenty miąższu. Zachowanie to opisano również w badaniach relacji między nietoperzami Carollia a roślinami z rodzaju Piper (Sil i in. 2024).
Rozmiar owocu wpływa na sposób postępowania. Mały owoc można połknąć niemal w całości. Większy trzeba odgryzać albo przenieść kawałkami. Znaczenie mają również twardość skórki i miąższu, masa owocu oraz wielkość znajdujących się w nim nasion.
Sok zostaje, włókna wypadają
Rudawki mogą rozgniatać miąższ językiem o podniebienie, połykać sok i miękkie części, a włókniste pozostałości wypluwać. Pod drzewami i nocnymi miejscami żerowania można znaleźć takie wypluwki oraz fragmenty owoców.
Sposób obróbki zależy od gatunku nietoperza oraz budowy owocu. Badania kilku gatunków rudawkowatych z Papui-Nowej Gwinei wykazały, że twardość pokarmu wpływa na sposób gryzienia i czas potrzebny na jego zjedzenie (Dumont i O’Neal 2004). Przegląd badań nad rudawkowatymi potwierdza, że gatunki te różnią się sposobem przetwarzania miąższu i obchodzenia się z nasionami (Aziz i in. 2021).
Jeżeli owoce zawierają drobne nasiona, część z nich zostaje połknięta. Przechodzą przez przewód pokarmowy nietoperza i mogą zostać wydalone podczas odpoczynku albo lotu. Większe nasiona są wypluwane, wypadają z przenoszonego owocu lub pozostają pod nocnym miejscem żerowania. Każda z tych dróg może oddalić nasiono od rośliny macierzystej.
Każdy ma swoje owoce
W lasach Ameryki poszczególne grupy nietoperzy mają wyraźne upodobania. Gatunki z rodzaju Artibeus często wybierają figi i owoce cekropii. Nietoperze z rodzaju Carollia są silnie związane z roślinami z rodzaju Piper, natomiast Sturnira często zjada owoce psiankowatych.
Analiza danych z całej krainy neotropikalnej wykazała, że wybór owoców nie jest dowolny. Poszczególne rodzaje, a nawet gatunki nietoperzy różnią się preferencjami pokarmowymi. Podczas doświadczeń wybierały owoce preferowanych rodzajów roślin również wtedy, gdy inne owoce były dostępne w większej ilości (Andrade i in. 2013).
Carollia często szuka pokarmu w niższych warstwach lasu, gdzie licznie występują rośliny z rodzaju Piper. Większe gatunki z rodzaju Artibeus mogą żerować wyżej, w koronach drzew, i przenosić większe owoce. Gdy ulubionego pokarmu brakuje, nietoperze uzupełniają dietę innymi owocami, nektarem, pyłkiem, a niektóre także owadami.
Leśnicy pracujący nocą
Po posiłku nietoperz odlatuje, ale ślad jego nocnej pracy pozostaje. Nasiona trafiają na skraje lasu, polany, dawne pola i inne miejsca oddalone od rośliny macierzystej. Szczególne znaczenie mają rośliny pionierskie – gatunki z rodzaju Piper, cekropie i niektóre figowce – które mogą zasiedlać miejsca otwarte.
Nie każdy owoc zostanie przeniesiony daleko i nie każde nasiono wykiełkuje. Znaczenie nietoperzy wynika z liczby lotów wykonywanych każdej nocy przez wiele osobników. Przegląd badań nad rudawkowatymi pokazuje, że przenoszenie nasion przez te zwierzęta może wspierać odnawianie roślinności, również w przekształconym i pofragmentowanym krajobrazie (Aziz i in. 2021).
Owocożerny nietoperz zabiera z owocu energię, a nasionu daje szansę na rozpoczęcie życia w nowym miejscu. W tropikalnym lesie ta wymiana trwa każdej nocy. Drzewo lub krzew przygotowuje pachnący owoc, nietoperz odnajduje go w ciemności, zabiera miąższ, a przy okazji przenosi przyszły las.
Literatura
Andrade T.Y., Thies W., Rogeri P.K., Kalko E.K.V., Mello M.A.R. 2013. Hierarchical fruit selection by Neotropical leaf-nosed bats (Chiroptera: Phyllostomidae). Journal of Mammalogy, 94(5): 1094–1101.
https://doi.org/10.1644/12-MAMM-A-244.1
Aziz S.A., McConkey K.R., Tanalgo K., Sritongchuay T., Low M.-R., Yong J.Y., Mildenstein T.L., Nuevo-Diego C.E., Lim V.-C., Racey P.A. 2021. The Critical Importance of Old World Fruit Bats for Healthy Ecosystems and Economies. Frontiers in Ecology and Evolution, 9: 641411.
https://doi.org/10.3389/fevo.2021.641411
Brokaw A.F., Davis E., Page R.A., Smotherman M. 2021. Flying bats use serial sampling to locate odour sources. Biology Letters, 17(10): 20210430.
https://doi.org/10.1098/rsbl.2021.0430
Dumont E.R., O’Neal R. 2004. Food Hardness and Feeding Behavior in Old World Fruit Bats (Pteropodidae). Journal of Mammalogy, 85(1): 8–14.
https://doi.org/10.1644/BOS-107
Fahr J., Abedi-Lartey M., Esch T., Machwitz M., Suu-Ire R., Wikelski M., Dechmann D.K.N. 2015. Pronounced Seasonal Changes in the Movement Ecology of a Highly Gregarious Central-Place Forager, the African Straw-Coloured Fruit Bat (Eidolon helvum). PLoS ONE, 10(10): e0138985.
https://doi.org/10.1371/journal.pone.0138985
Hodgkison R., Ayasse M., Häberlein C., Schulz S., Zubaid A., Mustapha W.A.W., Kunz T.H., Kalko E.K.V. 2013. Fruit bats and bat fruits: the evolution of fruit scent in relation to the foraging behaviour of bats in the New and Old World tropics. Functional Ecology, 27: 1075–1084.
https://doi.org/10.1111/1365-2435.12101
Kalko E.K.V., Condon M.A. 1998. Echolocation, olfaction and fruit display: how bats find fruit of flagellichorous cucurbits. Functional Ecology, 12: 364–372.
https://doi.org/10.1046/j.1365-2435.1998.00198.x
Korine C., Kalko E.K.V. 2005. Fruit detection and discrimination by small fruit-eating bats (Phyllostomidae): echolocation call design and olfaction. Behavioral Ecology and Sociobiology, 59: 12–23.
https://doi.org/10.1007/s00265-005-0003-1
Lee W.J., Falk B., Chiu C., Krishnan A., Arbour J.H., Moss C.F. 2017. Tongue-driven sonar beam steering by a lingual-echolocating fruit bat. PLoS Biology, 15(12): e2003148.
https://doi.org/10.1371/journal.pbio.2003148
Leiser-Miller L.B. 2020. A Fruitful Endeavor: Scent Cues and Echolocation Behavior Used by Carollia castanea to Find Fruit. Integrative Organismal Biology, 2(1): obaa007.
https://doi.org/10.1093/iob/obaa007
Lourie E., Shamay T., Toledo S., Nathan R. 2024. Spatial memory obviates following behaviour in an information centre of wild fruit bats. Philosophical Transactions of the Royal Society B, 379: 20240060.
https://doi.org/10.1098/rstb.2024.0060
Roberts B.J., Catterall C.P., Eby P., Kanowski J. 2012. Long-Distance and Frequent Movements of the Flying-Fox Pteropus poliocephalus: Implications for Management. PLoS ONE, 7(8): e42532.
https://doi.org/10.1371/journal.pone.0042532
Shafie N.J., Rahman N.A., Sah S.A.M., Rosely N.F.N., Sufian M. 2014. Feeding Behaviour of Cynopterus sphinx (Pteropodidae) Under Captive Conditions. Tropical Life Sciences Research, 25(2): 53–59.
https://pmc.ncbi.nlm.nih.gov/articles/PMC4814146/
Sil S., Visconti F., Chaverri G. 2024. Effects of Habitat and Fruit Scent on the Interactions between Short-tailed Fruit Bats and Piper Plants. Integrative Organismal Biology, 6(1): obae028.
https://doi.org/10.1093/iob/obae028
Spitzenberger F. 2006. The destruction and conservation of the Egyptian Fruit Bat Rousettus aegyptiacus in Cyprus: a historic review. European Journal of Wildlife Research, 52: 282–287.
https://doi.org/10.1007/s10344-006-0041-7
Yovel Y., Geva-Sagiv M., Ulanovsky N. 2011. Click-based echolocation in bats: not so primitive after all. Journal of Comparative Physiology A, 197: 515–530.
https://doi.org/10.1007/s00359-011-0639-4
