

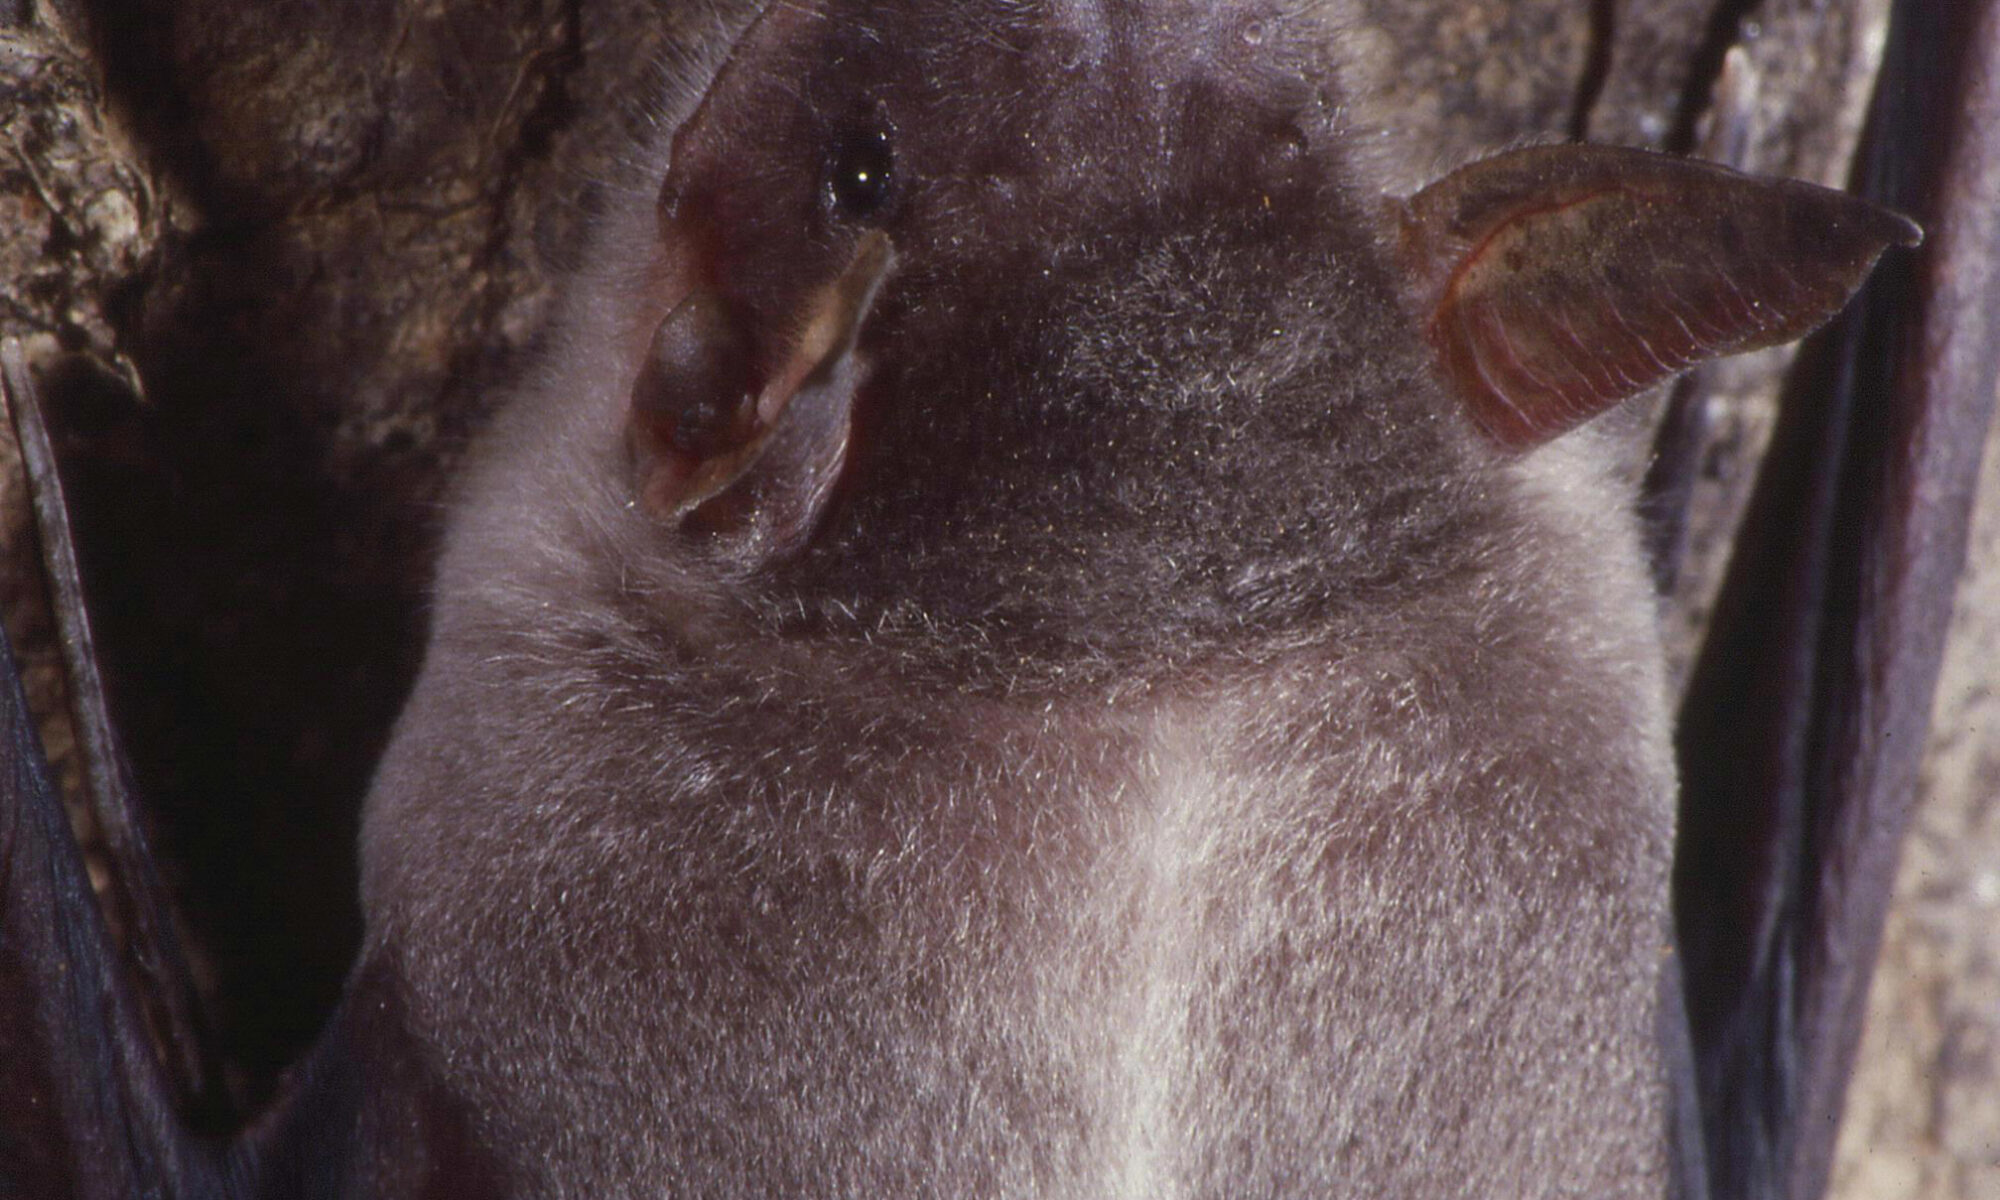
Kiedy myślimy o polującym nietoperzu, najłatwiej wyobrazić sobie ćmę albo chrząszcza schwytanego podczas nocnego lotu. I rzeczywiście – ogromna część nietoperzy żywiących się zwierzętami poluje przede wszystkim na stawonogi. Są jednak gatunki, dla których zdobyczą może być ryba, żaba, jaszczurka, ptak, gryzoń, a nawet… inny nietoperz.
Co więcej, nie wszystkie polują tak samo. Jeden nietoperz podsłuchuje nawołującą żabę. Drugi czeka na stanowisku łowieckim, aż usłyszy potencjalną zdobycz. Inny przelatuje tuż nad wodą i zanurza w niej zakończone pazurami stopy. Są wreszcie takie, w których diecie stwierdzono nawet ptaki.
Nietoperze polujące na kręgowce można spotkać w Ameryce Północnej i Południowej, Afryce, Azji, Australii, a także w Europie. Szczególnie wiele opisanych przykładów pochodzi z tropikalnych obszarów Ameryki Środkowej i Południowej. Nie tworzą jednej grupy. Polowanie na kręgowce pojawiło się w różnych liniach ewolucyjnych i przybrało bardzo różne formy.
Przegląd Gual-Suárez i Medellín (2021), oparty na 241 pracach dotyczących 17 gatunków, pokazuje, jak rzadkim zjawiskiem jest regularne polowanie nietoperzy na lądowe kręgowce. Autorzy wskazali dziewięć gatunków, dla których lądowe kręgowce stanowią główną część pokarmu przez cały rok lub sezonowo, przynajmniej w części zasięgu. U innych kręgowce mogą być tylko uzupełnieniem diety. Osobną historią są nietoperze chwytające ryby, dlatego warto spojrzeć szerzej na wszystkie gatunki polujące na kręgowce.
W tropikalnej Ameryce Środkowej i Południowej można znaleźć jedną z najbardziej niezwykłych technik polowania.
**Żabojadek brazylijski (*Trachops cirrhosus*)** poluje między innymi na żaby. Nie musi jednak najpierw zobaczyć swojej ofiary. Może ją usłyszeć.
Samce żab nawołują samice i tym samym zdradzają swoje położenie również drapieżnikowi. Nietoperz nasłuchuje tych sygnałów i potrafi wykorzystać je do wyboru oraz lokalizacji zdobyczy. Klasyczne doświadczenia Tuttle’a i Ryana (1981) dostarczyły bezpośrednich dowodów, że reaguje na głosy żab i potrafi rozróżniać sygnały związane z różnymi potencjalnymi ofiarami.
Polowanie jest więc przykładem podsłuchiwania komunikacji innego gatunku. Sygnał, który dla żaby ma przyciągnąć partnerkę, może jednocześnie sprowadzić drapieżnika.
Żabojadek brazylijski poluje nie tylko na żaby. Badania DNA pozwoliły ustalić, że zjada również jaszczurki z rodzaju Anolis, a niekiedy także ptaki i inne nietoperze. Naukowcy odkryli też, że potrafi usłyszeć szelest jaszczurki poruszającej się po ziemi i wykorzystać ten dźwięk do odnalezienia zdobyczy. Podczas polowania uważnie nasłuchuje więc otoczenia. Może go naprowadzić zarówno nawoływanie żaby, jak i odgłosy poruszającej się jaszczurki (Page et al. 2020).
Inną strategię stosuje **widmowiec wielki (*Vampyrum spectrum*)**, największy nietoperz obu Ameryk. Mimo nazwy kojarzącej go z wampirami nie żywi się krwią. To duży drapieżnik, w którego diecie stwierdzono między innymi ptaki, gryzonie i inne nietoperze.
Starsze obserwacje wskazują, że wśród jego ptasich ofiar znajdują się gatunki odpoczywające nocą na roślinności. Badacze zwrócili uwagę, że niektóre z tych ptaków miały charakterystyczny zapach. Na tej podstawie wysunięto hipotezę, że widmowiec wielki może wykorzystywać węch do odnajdywania zdobyczy. Samo występowanie charakterystycznego zapachu nie jest jednak dowodem na wykorzystywanie go podczas polowania. Mechanizm ten wymaga dalszych badań.
Znacznie lepiej udokumentowane jest to, co dzieje się ze zdobyczą przyniesioną do kryjówki. Nagrania wideo pokazały widmowce przynoszące zdobycz do schronienia oraz przekazujące ją innym członkom grupy rodzinnej. Duża zdobycz może być przytrzymywana między skrzydłami i pazurami kciuków, a jej zjedzenie może zajmować około 30–40 minut. Czas ten jest wartością szacunkową, ponieważ zachowanie rejestrowano w krótkich fragmentach nagrań (Tietge et al. 2025).
Badania prowadzone w Nikaragui przy użyciu metabarkodingu wykazały w diecie widmowca wielkiego 27 gatunków kręgowców. Były wśród nich ptaki, gryzonie oraz inne nietoperze (Martínez-Fonseca et al. 2022). Wyniki te dokumentują skład pokarmu, ale same analizy DNA nie pozwalają odtworzyć przebiegu polowania.
W tej samej części świata żyje kolejny łowca kręgowców – **wełnianek uszaty (*Chrotopterus auritus*)**. Występuje od południowego Meksyku przez Amerykę Środkową po znaczną część Ameryki Południowej. W jego diecie znajdują się duże stawonogi, ale również niewielkie ssaki, ptaki, płazy, gady i inne nietoperze.
Badania prowadzone w południowym Meksyku pozwoliły lepiej poznać przemieszczanie się tego drapieżnika i sposób wykorzystywania przestrzeni leśnej (Vleut et al. 2019). Udokumentowano również przypadek drapieżnictwa wełnianka uszatego na innym nietoperzu – *Nyctinomops laticaudatus* (Borloti & Pimenta 2019).
Choć wiadomo, jakie zwierzęta padają jego ofiarą, szczegółowy przebieg polowania na poszczególne grupy kręgowców pozostaje słabiej poznany. Dlatego nie należy przypisywać temu gatunkowi jednej, dokładnie opisanej techniki chwytania zdobyczy.
Z lasu przenieśmy się nad wodę, bo właśnie tam można zobaczyć jedną z najbardziej widowiskowych technik łowieckich wśród nietoperzy.
**Rybak nocny (*Noctilio leporinus*)** występuje w Ameryce Środkowej i Południowej oraz na Karaibach i jest jednym z najlepiej poznanych nietoperzy łowiących ryby.
W czasie poszukiwania zdobyczy może lecieć zaledwie kilkadziesiąt centymetrów nad taflą. Gdy obniża lot, długie tylne kończyny są wyciągane w kierunku powierzchni wody.
Ryba znajdująca się całkowicie pod wodą jest dla echolokującego nietoperza trudnym celem. Sytuacja zmienia się, kiedy pojawi się przy powierzchni. Fragment ciała naruszający taflę oraz powstające na wodzie fale mogą dostarczyć informacji o obecności zdobyczy. Badania akustyczne wykazały, że nawet rozchodzące się kręgi na wodzie mogą wytwarzać echo wystarczająco silne, aby zostało wykryte przez nietoperza (Übernickel et al. 2016).
Wtedy następuje atak.
Rybak nocny opuszcza stopy i zanurza je w miejscu, w którym wykrył cel. Potrafi kontynuować atak również wtedy, gdy wskazówka na powierzchni była krótkotrwała i zniknęła przed momentem schwytania zdobyczy. Badania eksperymentalne wskazują, że może wykorzystywać informację o wcześniej wykrytym położeniu celu (Übernickel et al. 2013).
Rybak nocny stosuje także inną metodę. Obniża lot, zanurza długie, zakrzywione pazury i przeciąga nimi przez wodę. Taki ruch może trwać znacznie dłużej niż pojedyncza próba schwytania wcześniej zlokalizowanej ryby. Nietoperz może w ten sposób przeszukiwać fragment powierzchni, w którym spodziewa się zdobyczy. Obserwacje terenowe Schnitzlera i współpracowników (1994) pokazały, że rybak nocny potrafi przełączać się między różnymi sposobami poszukiwania i chwytania ryb.
Ryby potrafią chwytać również nietoperze żyjące znacznie bliżej Polski.
*Myotis capaccinii*, występujący w rejonie Morza Śródziemnego i w części południowo-zachodniej Azji, jest przede wszystkim łowcą bezkręgowców związanych z wodą. U tego gatunku stwierdzono jednak również chwytanie niewielkich ryb.
Tutaj można zobaczyć, jak technika polowania na bezkręgowce mogła zostać wykorzystana do chwytania kręgowców.
Podczas chwytania niewielkiej zdobyczy z powierzchni wody nietoperz wykonuje stopami stosunkowo krótki i płytki ruch. Kiedy celem jest ryba, kontakt z wodą jest dłuższy i głębszy. Zmienia się również końcowa sekwencja sygnałów echolokacyjnych poprzedzających schwytanie zdobyczy. Nietoperz dostosowuje więc jednocześnie pracę sonaru i ruch ciała do wielkości oraz położenia celu (Aizpurua et al. 2014).
Eksperymenty pokazały również, że *Myotis capaccinii* potrafi reagować na cel znikający pod wodą. Na podstawie tych wyników badacze rozważają hipotezę, że chwytanie ryb mogło rozwinąć się z wcześniejszej umiejętności zgarniania pokarmu z powierzchni. Jest to wyjaśnienie ewolucyjne, a nie bezpośrednio zaobserwowany proces.
W Afryce spotykamy jeszcze inną grupę łowców.
*Nycteris grandis* żyje w Afryce Subsaharyjskiej. W jego diecie stwierdzano duże stawonogi, ale również ryby, żaby, ptaki i inne nietoperze. Fenton i współpracownicy (1981), badając ten gatunek w Zimbabwe, pokazali, jak szerokie może być spektrum jego zdobyczy.
Obserwacje wskazują, że *Nycteris grandis* może wykorzystywać zarówno polowanie z zasiadki, jak i aktywne poszukiwanie pokarmu. Szczegółowy przebieg ataku na kręgowce jest jednak znacznie słabiej udokumentowany niż jego dieta. Dlatego w przypadku tego gatunku łatwiej powiedzieć, co łowi, niż dokładnie odtworzyć, jak wygląda każda sekwencja polowania.
W Azji żyje **lironos wielkoskrzydły (*Lyroderma lyra*)**, w starszej literaturze występujący pod nazwą *Megaderma lyra*. To gatunek, przy którym technikę polowania udało się prześledzić znacznie dokładniej.
Nietoperz może nasłuchiwać szelestu wytwarzanego przez zwierzę poruszające się po podłożu, ale nie polega wyłącznie na dźwiękach ofiary. Badania wykazały, że używa echolokacji podczas całej sekwencji polowania. Potrafi odnaleźć nawet nieruchomą i niewydającą dźwięków zdobycz. Nad potencjalnym celem może na chwilę zawisnąć, zwiększając intensywność sondowania echolokacyjnego, a następnie zaatakować (Schmidt et al. 2000).
Badania z żabami pozwoliły zobaczyć sam moment ataku. Dorosły lironos wielkoskrzydły może wylądować bezpośrednio na żabie albo w jej pobliżu i dopaść ją po podłożu. Po schwytaniu zabiera zdobycz w miejsce, gdzie ją zjada. Młode muszą tę umiejętność doskonalić – wraz z wiekiem lądują coraz bliżej celu, potrzebują mniej prób i sprawniej radzą sobie ze zdobyczą (Raghuram & Marimuthu 2007).
Gatunek potrafi polować nawet na żabę znajdującą się w wodzie. W doświadczeniach nietoperze wykonywały lot poszukiwawczy nad powierzchnią, lokalizowały wystającą ponad wodę głowę nieruchomej żaby, zawisały nad nią przez około dwie sekundy, a następnie chwytały ją pyskiem (Marimuthu et al. 1995).
Australia ma własnego dużego łowcę kręgowców – **dusznika australijskiego (*Macroderma gigas*)**.
Ten nietoperz może stosować strategię „siedź i czekaj”. Wykorzystuje gałąź jako stanowisko łowieckie i nasłuchuje otoczenia. Kiedy wykryje potencjalną zdobycz, opuszcza stanowisko, wykonuje wypad w jej kierunku, a po schwytaniu może wrócić na miejsce, aby ją zjeść. Obserwacje terenowe pokazały, że takie stanowiska są regularnie zmieniane (Tidemann et al. 1985).
Dusznik australijski może również aktywnie przeszukiwać teren, lecąc nisko nad roślinnością. W lokalizowaniu zdobyczy ważny jest jego bardzo czuły słuch, pozwalający wykorzystywać dźwięki wytwarzane przez poruszające się zwierzęta, a także echolokacja i wzrok.
Badania diety populacji z regionu Pilbara w Australii Zachodniej, wykorzystujące zarówno pozostałości ofiar, jak i metabarkoding DNA, pozwoliły zidentyfikować 46 taksonów kręgowców. Szczególnie ważną część zdobyczy stanowiły niewielkie ssaki i ptaki, natomiast gady i płazy pojawiały się rzadziej (Arteaga Claramunt et al. 2018). Analizy te dokumentują różnorodność pokarmu, lecz nie pozwalają ustalić techniki schwytania każdej ofiary.
Jeszcze innym wyzwaniem jest schwytanie kręgowca, który sam potrafi latać.
W Europie takim drapieżnikiem jest **borowiec olbrzymi (*Nyctalus lasiopterus*)**. Przez znaczną część roku żywi się owadami, ale w okresach migracji ptaków wykorzystuje także drobne ptaki wróblowe.
Badania dostarczyły dowodów, że ptaki stanowią część jego pokarmu. Wykorzystano między innymi analizy diety oraz stabilnych izotopów, które pozwalają wnioskować o pochodzeniu przyswajanego pokarmu.
Na podstawie sezonowości zjadania ptaków, ich nocnych migracji i właściwości lotu borowca olbrzymiego badacze wysunęli hipotezę, że nietoperz chwyta migrujące ptaki w powietrzu, prawdopodobnie również na dużych wysokościach (Popa-Lisseanu et al. 2007).
Trzeba jednak rozdzielić dwie kwestie. **Obecność ptaków w diecie jest udokumentowana. Dokładne miejsce i sposób ich schwytania pozostają przedmiotem wnioskowania naukowego.** W przywołanych badaniach nie zarejestrowano bezpośrednio momentu powietrznego ataku.
Podobna sytuacja dotyczy żyjącego w Azji Wschodniej *Nyctalus aviator*. Badania molekularne wykazały obecność ptasiego DNA w próbce pochodzącej od ciężarnej samicy. Zidentyfikowano je jako DNA *Locustella ochotensis*. Wcześniejsze badania stwierdzały również pióra w odchodach tego nietoperza, szczególnie w okresach migracji ptaków (Heim et al. 2019).
Wyniki potwierdzają, że gatunek zjada ptaki. Nie pokazują jednak samego momentu schwytania zdobyczy. Polowanie na migrujące ptaki w locie pozostaje prawdopodobnym wyjaśnieniem, które wymaga dalszych bezpośrednich obserwacji.
W Azji żyje także *Ia io*. Analizy DNA pokarmu wykazały u niego 22 gatunki ptaków wróblowych należących do siedmiu rodzin. Ofiary ważyły około 6–19 gramów, a większość stanowiły gatunki migrujące. Ślady ptasiej zdobyczy wykryto u około 29% badanych nietoperzy wiosną, 6% latem i aż 78% jesienią (Gong et al. 2021).
Tak wyraźna sezonowość wspiera przypuszczenie, że nietoperze wykorzystują okresowe przeloty ptaków. Nie stanowi jednak bezpośredniego dowodu na konkretną technikę ataku. Aby ją poznać, potrzebne są obserwacje zachowania polujących osobników.
Jeśli spojrzeć na mapę świata, widać, że nietoperze polujące na kręgowce nie są specjalnością jednego kontynentu. Spotykamy je w **Ameryce Północnej i Południowej, Afryce, Azji, Australii oraz Europie**. W Ameryce szczególnie wiele opisanych przykładów pochodzi z tropikalnych obszarów Ameryki Środkowej i Południowej. Brakuje ich na Antarktydzie, gdzie nietoperze w ogóle nie występują.
Geografia mówi jednak tylko część tej historii. Równie interesujące jest to, że w różnych miejscach świata pojawiły się odmienne sposoby zdobywania tak wymagającego pokarmu. W tropikalnej Ameryce żabojadek brazylijski podsłuchuje żaby, widmowiec wielki zjada ptaki, gryzonie i inne nietoperze, a rybak nocny łowi ryby. W Afryce *Nycteris grandis* sięga po różne grupy kręgowców. W Azji lironos wielkoskrzydły potrafi atakować żaby, a *Ia io* zjada migrujące ptaki. W Australii dusznik australijski poluje między innymi na niewielkie ssaki, ptaki, gady i płazy. W Europie borowiec olbrzymi wykorzystuje ptaki jako sezonowe źródło pokarmu.
Nie ma więc jednego miejsca ani jednej techniki polowania na kręgowce. Badania dokumentują cały zestaw rozwiązań: **podsłuchiwanie, echolokację, wykorzystywanie wzroku, zasiadkę, zbieranie zdobyczy z podłoża, chwytanie jej pyskiem i przeczesywanie powierzchni wody pazurami**. W przypadku niektórych gatunków naukowcy rozważają także rolę węchu oraz polowanie na ptaki wysoko w powietrzu, ale mechanizmy te nie zostały jeszcze równie dobrze udokumentowane.
To właśnie sposób zdobywania pokarmu okazuje się równie fascynujący jak sam jadłospis. Ryba może w ułamku sekundy zniknąć pod powierzchnią, żaba przestać nawoływać, gryzoń uciec, a ptak porusza się w tej samej trójwymiarowej przestrzeni co nietoperz.
Każda z tych zdobyczy stawia przed drapieżnikiem inne wymagania. Obserwacje i eksperymenty pozwalają coraz lepiej poznawać sposoby, w jakie nietoperze sobie z nimi radzą. Analizy DNA odsłaniają natomiast skład ich pokarmu, również tam, gdzie bezpośrednia obserwacja polowania jest niezwykle trudna.
A tam, gdzie wciąż pozostają hipotezy, jest jeszcze wiele do odkrycia.
Fot. Autorstwa Susan Ellis, Bugwood.org – This image is Image Number 5369422 at Insect Images, a source for entomological images operated by The Bugwood Network at the University of Georgia and the USDA Forest Service.Check archived versions at web.archive/archive.is, CC BY 3.0 us, https://commons.wikimedia.org/w/index.php?curid=6860019
Literatura
Gual-Suárez F., Medellín R.A. 2021. *We eat meat: a review of carnivory in bats*. Mammal Review 51: 540–558.
https://doi.org/10.1111/mam.12254
Tuttle M.D., Ryan M.J. 1981. *Bat predation and the evolution of frog vocalizations in the Neotropics*. Science 214: 677–678.
https://doi.org/10.1126/science.214.4521.677
Page R.A. et al. 2020. *Sensory ecology of the frog-eating bat, Trachops cirrhosus, from DNA metabarcoding and behavior*. Behavioral Ecology 31: 1420–1428.
https://doi.org/10.1093/beheco/araa100
Martínez-Fonseca J.G. et al. 2022. *Vampyrum spectrum (Phyllostomidae) movement and prey revealed by radio-telemetry and DNA metabarcoding*. PLOS ONE 17: e0265968.
https://doi.org/10.1371/journal.pone.0265968
Tietge M., Artavia Durán E., Knörnschild M. 2025. *Cooperative behaviors and social interactions in the carnivorous bat Vampyrum spectrum*. PLOS ONE 20: e0321338.
https://doi.org/10.1371/journal.pone.0321338
Vleut I., Carter G.G., Medellín R.A. 2019. *Movement ecology of the carnivorous woolly false vampire bat (Chrotopterus auritus) in southern Mexico*. PLOS ONE 14: e0220504.
https://doi.org/10.1371/journal.pone.0220504
Borloti I.S., Pimenta V.T. 2019. *First record of predation of Nyctinomops laticaudatus (É. Geoffroy, 1805) by Chrotopterus auritus (Peters, 1856) (Mammalia: Chiroptera)*. Biodiversity Data Journal 7: e38303.
https://doi.org/10.3897/BDJ.7.e38303
Schnitzler H.-U., Kalko E.K.V., Kaipf I., Grinnell A.D. 1994. *Fishing and echolocation behavior of the greater bulldog bat, Noctilio leporinus, in the field*. Behavioral Ecology and Sociobiology 35: 327–345.
https://doi.org/10.1007/BF00184422
Übernickel K., Tschapka M., Kalko E.K.V. 2013. *Flexible echolocation behavior of trawling bats during approach of continuous or transient prey cues*. Frontiers in Physiology 4: 96.
https://doi.org/10.3389/fphys.2013.00096
Übernickel K., Simon R., Kalko E.K.V., Tschapka M. 2016. *Sensory challenges for trawling bats: Finding transient prey on water surfaces*. Journal of the Acoustical Society of America 139: 1914–1922.
https://doi.org/10.1121/1.4944756
Aizpurua O. et al. 2014. *Fine-tuned echolocation and capture-flight of Myotis capaccinii when facing different-sized insect and fish prey*. Journal of Experimental Biology 217: 3318–3325.
https://doi.org/10.1242/jeb.104992
Fenton M.B. et al. 1981. *Nycteris grandis (Nycteridae): an African carnivorous bat*. Journal of Zoology 194: 461–465.
https://doi.org/10.1111/j.1469-7998.1981.tb04594.x
Schmidt S. et al. 2000. *The role of echolocation in the hunting of terrestrial prey – new evidence for an underestimated strategy in the gleaning bat, Megaderma lyra*. Journal of Comparative Physiology A 186: 975–988.
https://doi.org/10.1007/s003590000151
Marimuthu G., Habersetzer J., Leippert D. 1995. *Active Acoustic Gleaning from the Water Surface by the Indian False Vampire Bat, Megaderma lyra*. Ethology 99: 61–74.
https://doi.org/10.1111/j.1439-0310.1995.tb01089.x
Raghuram H., Marimuthu G. 2007. *Development of prey capture in the Indian false vampire bat Megaderma lyra*. Ethology 113: 555–561.
https://doi.org/10.1111/j.1439-0310.2007.01351.x
Tidemann C.R., Priddel D.M., Nelson J.E., Pettigrew J.D. 1985. *Foraging behaviour of the Australian ghost bat, Macroderma gigas (Microchiroptera: Megadermatidae)*. Australian Journal of Zoology 33: 705–713.
https://doi.org/10.1071/ZO9850705
Arteaga Claramunt A.M. et al. 2018. *Determination of the diet of the ghost bat (Macroderma gigas) in the Pilbara region of Western Australia from dried prey remains and DNA metabarcoding*. Australian Journal of Zoology 66: 195–200.
https://doi.org/10.1071/ZO18040
Popa-Lisseanu A.G. et al. 2007. *Bats’ conquest of a formidable foraging niche: the myriads of nocturnally migrating songbirds*. PLOS ONE 2: e205.
https://doi.org/10.1371/journal.pone.0000205
Heim O. et al. 2019. *Molecular evidence of bird-eating behavior in Nyctalus aviator*. Acta Ethologica 22: 223–226.
https://doi.org/10.1007/s10211-019-00319-5
Gong L. et al. 2021. *Who’s for dinner? Bird prey diversity and choice in the great evening bat, Ia io*. Ecology and Evolution 11: 8400–8409.
https://doi.org/10.1002/ece3.7667
